dimarts, 1 de desembre del 2009

Enzims implicats en l'elaboració de la cervesa

Tot i que la cervesa es pot elaborar sense l'adició de cap enzim extern això no vol dir que no intervinguin enzims en la seva elaboració. Els enzims es trobem en les matèries primeres (ordi, llevats que afegim per fer la fermentació) i s'hauran de controlar les condicions perquè actuïn correctament. En la producció industrial de cervesa, però, cada cop s'utilitzen més enzims "externs" que afegim entre altres coses per poder utilitzar altres matèries primeres, estalviar costos, millorar el procés d'elaboració i el que és més important, perquè el producte final tingui sempre les mateixes característiques. La matèria primera per elaborar la cervesa és l'ordi (barley o cebada). En els seus grans trobem principalment una part de fibra, midó i lípids. Els diferents passos per obtenir la cervesa (procés conegut amb el nom de brewing) són:
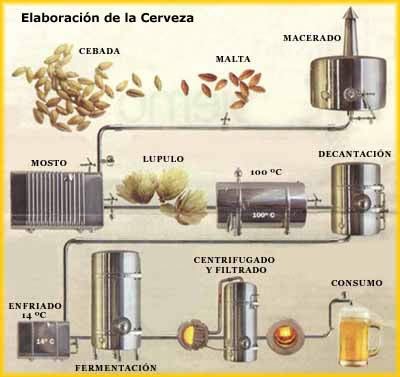
  • Maltatge o Malting: L'objectiu es transformar l'ordi, germinant-lo en malta. En aquest procés es sintetitzen els enzims (amilases, cel·lulases i proteases principalment del propi ordi, amb l'objectiu de que la llavor creixi per regenerar una nova planta) per a utilitzar i transformar el midó en glucosa i maltosa. En aquest procés cal controlar molt bé la Temperatura i humitat
  • Maceració o Mashing: Un cop l'ordi ha germinat es molt i s'afegeix aigua (l'aigua participa en el mecanisme de reacció de les hidrolases). L'objectiu és degradar el midó en sucres fermentables (glucosa i maltosa principalment) és a dir fer una sacarificació. La producció de proteases i cel·lulases i el fet de moldre la malta ajudaran a que les amilases accedeixin més fàcilment al midó. Les proteases també ens serviran per treure la terbolesa i són importants en l'estabilitat i formació de l'escuma del producte final
  • Cocció del most o Boiling: El temps i T de la cocció influiran en el producte final. La cervesa negra està més "torrada" que la rosa. En aquest punt s'afegeix el llúpol (lúpulo o hop), un producte vegetal que es va introduir l'any 1133 pels seus efectes bactericides i que li dóna el característic gust amarg a la cervesa
  • Després d'una clarificació o filtratge i un refredament té lloc la Fermentació de la glucosa en etanol i CO2 per efecte dels llevats (Saccharomyces cerevisiae o Saccharomyces carlbergensis). El CO2 es recull i s'afegeix més tard (carbonatació)
  • Les últimes etapes són una Maduració, filtració, carbonatació i embotellament

Els enzims "externs" que es poden afegir són amilases, amiloglucosidases, cel·lulases, beta-glucanases i proteases en les fases de la maceració i abans i després de la fermentació per tal de millorar la degradació del midó, reduir la terbolesa, controlar l'escuma, augmentar els rendiments o facilitar els filtratges. Una possibilitat en la elaboració de la cervesa és afegir més grans de cereal (ordi o altres cereals) sense germinar després del maltatge. Així podem augmentar la producció perquè part de l'ordi no cal que germini o podem obtenir cerveses amb característiques finals diferents. Si es fa això és important afegir els enzims (amilases, proteases, cel·lulases) per fer la maceració correctament. En últim extrem es podria partir directament de l'ordi sense germinar si afegim els enzims necessaris per degradar el midó. Per obtenir cerveses light o de baix contingut en carbohidrats és important que tot el midó es transformi en sucres fermentables abans de la fermentació perquè tot el midó sigui fermentat a etanol i no en quedi en el producte final. Per això cal afegir amiloglucosidases abans de la fermentació.

dimarts, 24 de novembre del 2009

Paper dels enzims en el processament del mido i isomerització de la glucosa

Els grans dels cereals són una matèria primera molt important. Estan formats (en composició variable depenent de cada espècie) fonamentalment per midó, proteïnes, olis o lípids i fibra. L'objectiu del gra de cereal és la d'acumular nutrients que la llavor utilitzarà en primera instància en la germinació. De la mateixa manera que es pot utilitzar la cel·lulosa com a matèria primera per obtenir etanol o altres productes, també podem utilitzar el midó dels grans dels cereals per obtenir glucosa o solucions de glucosa i fructosa, o etanol o altres productes (a partir de la fermentació o transformació de la glucosa). Els enzims que seran necessaris són les amilases i amiloglucosidases o glucoamilases. Als Estats Units el blat de moro és el principal cereal utilitzat com a matèria primera per obtenir etanol i solucions dolces riques en glucosa i fructosa (també anomenades xarops -jarabes- de glucosa i fructosa -High-fructose corn syrup ,HFCS, en anglès-) utilitzades en la indústria alimentària.

El procés global d'aprofitament del midó consta de diverses etapes:
  1. Liquació del polisacàrid
  2. Sacarificació, obtenció de sucres fermentables (glucosa)
  3. Isomerització de part de la glucosa a fructosa o fermentació de la glucosa per obtenir el producte desitjat (per exemple etanol)

En les fases de liquació i sacarificació s'afegeixen amilases i amiloglucosidases i en la isomerització de la glucosa s'utilitza l'enzim glucosa isomerasa de forma immobilitzada. La liquació del midó es fa a Temperatures elevades (uns 100 graus C), en les altres etapes cal però reduir la Temperatura per no desnaturalitzar els enzims. Les diferents etapes i enzims utilitzats requereixen diferents condicions de pH i cofactors i per això cal anar canviant les condicions del medi de reacció en les diferents etapes. En la liquació cal augmentar el pH fins a 6.0 aprox i afegir ions Ca2+. En la sacarificació cal baixar el pH a 4.5 aprox. i en la isomerització de la glucosa cal augmentar de nou al pH a 7.5 aprox, treure els ions Ca2+ i afegir ions Mg2+.

La reacció de isomerització de la glucosa en fructosa catalitzada per la glucosa isomerasa (E.C. 5.3.1.5) és una reacció d'equilibri. Si volem obtenir solucions amb unes concentracions de fructosa de més del 42%, hem d'augmentar la Temperatura. Podem obtenir així solucions de 55% en fructosa. El principal inconvenient és que l'enzim serà menys estable a altes Temperatures. L'enzim glucosa isomerasa (E.C 5.3.1.5) és en realitat una xilosa isomerasa que catalitza la isomerització de la xilosa a xilulosa. L'activitat de isomerització de la glucosa en fructosa és una activitat "colateral" de l'enzim. L'enzim té més afinitat (Km més petita) per la xilosa que per la glucosa. La glucosa isomerasa és un enzim intracel·lular. Això fa que la seva producció sigui cara. Per aquest motiu i per augmentar l'estabilitat de l'enzim a altes T, la glucosa isomerasa s'utilitza de forma immobilitzada per a poder-la reutilitzar. Per a que el temps de la reacció d'isomerització es mantingui constant en el procés industrial independentment dels dies que fa que reutilitzem l'enzim, es pot treballar amb diversos reactors en paral·lel (cada reactor amb la glucosa isomerasa immobilitzada en dies diferents) modificant el flux d'entrada de cada reactor.

Existeixen diverses estratègies per millorar el procés industrial d'aprofitament del midó. Entre altres podem modificar o aïllar nous enzims. Entre altres, interessarien amilases amb un pH òptim més baix (de 4.5 aprox.), glucoamilases més termoestables i glucosa isomerases més termoestables, amb un pH òptim més baix i amb més afinitat per la glucosa. S'han aïllat glucosa isomerases d'organismes termòfils. Alguns dels canvis d'aminoàcids que s'observen entre aquests enzims i els corresponents a organismes mesòfils són substitucions de les Glicines per prolines o alanines (per disminuir la llibertat conformacional) i substitucions de les glutamines per histidines (per evitar desminacions per efecte de la T). El problema d'aquests enzims termòfils és que necessiten ions Mn2+ o Co2+, no permesos en elevades concentracions en el producte final si s'ha d'utilitzar en la indústria alimentària.

dimarts, 17 de novembre del 2009

Producció enzimàtica d'alcohol i aprofitament de la biomassa.


La biomassa és la massa generada pel creixement dels organismes vius, ja siguin microorganismes, plantes o animals, i és el resultat de la bioconversió per fotosíntesi de l'energia solar. La biomassa primària es produeix per conversió directa d'energia solar en energia química i està formada pels boscos, selves, algues, agricultura, ... La biomassa secundària i terciària és la biomassa residual que resta després de la utilització pels éssers vius de la biomassa primària. La biomassa secundària està formada per residus agrícoles i forestals i la terciària per residus animals, urbans i industrials. El més interessant és l'aprofitament de la biomassa secundària i terciària ja que eliminem residus i els aprofitem per alguna cosa, alhora que no es contribueix a la desforestació. Podem dividir la utilització de la biomassa en utilització energètica (tant els processos termoquímics (cremar la biomassa), com bioquímics per obtenir un compost -p.ex. etanol- que pot utilitzar-se com a combustible) i utilització no energètica (com l'obtenció de pasta de paper i productes derivats dels components principals de la biomassa).

La forma més abundant de biomassa sobre la terra és la biomassa lignocel·lulòsica (produïda a la biosfera de l'ordre de 1011 tm/any) formada per compostos minoritaris (com les cendres i components orgànics de baix pes molecular -terpens, carbohidrats, flavonoides, tanins, alcohols, ....-) i components polimèrics, principalment cel·lulosa, hemicel·lulosa i lignina en proporció 4:3:3.
  • La cel·lulosa és el component principal i el que té un major aprofitament. És un homopolímer format per beta-D-glucosa units per enllaços beta-1,4. La unitat repetitiva és la cel·lobiosa (dues molècules de glucosa amb un enllaç beta-1,4). En la conformació de "cadira" tots els grups hidroxils de la glucosa estan en posicions equatorials i això permet una estructura en capes on cadenes senzilles s'enllacen mitjançant ponts d'hidrogen formant estructures molt complexes amb diferents nivells organitzatius -protofibrilles, microfibrilles, macrofibrilles i fibres-. Les cadenes polimèriques de cel·lulosa tenen diferents graus d'ordenament. Les fraccions menys ordenades constitueixen la regió amorfa i les més ordenades la regió cristal·lina. Les regions amorfes són més fàcilment accessibles pels solvents, enzims, ..
  • Les hemicel·luloses són la resta de polisacàrids, generalment ramificats, diferents de la cel·lulosa que formen les parets de les cèl·lules vegetals. Els monòmers són principalment l'arabinosa, xilosa, mannosa, galactosa, glucosa, ... i els àcids derivats. La seva composició depèn de l'espècie.
  • La lignina presenta propietats adhesives i és la responsable de mantenir les cèl·lules vegetals unides. És un heteropolímer format pels alcohols sinapílic, cumarílic i coniferílic principalment.

L'associació entre la lignina i els polisacàrids és la que determina la rigidesa i resistència estructural de la fusta. Aquestes associacions fan del material lignocel·lulòsic un material compacte de gran resistència als atacs enzimàtics.

A partir de la lignina, hemicel·lulosa o cel·lulosa podem obtenir energia o altres productes mitjançant transformacions químiques, enzimàtiques o fermentacions. L'aprofitament de la cel·lulosa passa per la seva hidròlisi en glucosa. A partir de la glucosa podem obtenir molts altres productes, per exemple podem obtenir etanol per fermentació. Els enzims encarregats de degradar la biomassa són les cel·lulases, xilanases, ... Per degradar la cel·lulosa necessitarem endoglucanases (3.2.1.4) que trenquen els enllaços beta-1,4 interns, cel·lobiohidrolases o exoglucanases (3.2.1.91) que alliberen cel·lobiosa i beta-glucosidases (3.2.1.21) que trenquen la cel·lobiosa en glucosa. El principal problema en la degradació de la biomassa és l'accessibilitat dels enzims, la pròpia reactivitat de la cel·lulosa i la presència de les hemicel·luloses i lignina. Abans de la hidròlisi enzimàtica de la cel·lulosa cal fer un pretractament (químic, físic o físico-químic) per tal disminuir la mida de partícula, eliminar les hemicel·luloses (més solubles que la cel·lulosa), eliminar part de la lignina, augmentar els extrems en les cadenes de cel·lulosa i disminuir la seva cristal·linitat. Encara que teòricament és possible la hidròlisi de la cel·lulosa sense la presència d'enzims en medi àcid, la hidròlisi enzimàtica presenta més avantatges i el tractament amb medi àcid pot formar part del pretractament.

Després del pretractament cal fer la hidròlisi enzimàtica de la cel·lulosa, també anomenada sacarificació. Després d'aquest procés podem separar la glucosa generada (soluble) de la lignina, que no es degrada i no es solubilitza. En el disseny d'una planta de degradació de biomassa és fonamental disposar d'una via de producció dels enzims. Seria inviable econòmicament obtenir els enzims comercialment. Normalment en el disseny global d'una planta de degradació de biomassa es planteja una sacarificació (hidròlisi de la cel·lulosa a glucosa) i una posterior fermentació de la glucosa per obtenir el producte desitjat (per exemple etanol). Els productes de degradació de la cel·lulosa (glucosa i cel·lobiosa) inhibeixen als enzims responsables de la degradació de la cel·lulosa (cel·lulases i beta-glucosidases). Per això l'ideal seria poder fer una sacarificació i una fermentació simultània (això es coneix com SSF), així la glucosa generada es fermentaria directament i no hi hauria inhibició per producte.

No existeixen encara grans plantes de degradació enzimàtica de biomassa. Sí que s'han fet experiències pilot a petita escala, com a França, Estats Units o Suècia.

dimarts, 3 de novembre del 2009

Enzims utilitzats en els detergents

El sabó era conegut per la majoria de cultures antigues, que l'usaven tant per al cos com per a la roba. El feien amb aigua, greixos vegetals o animals, i cendres vegetals o substàncies minerals com la sosa càustica. A partir del segle II diverses ciutats van esdevenir centres productius de sabó importants, i en distribuïen per tota la mediterrània. Fins al segle XV un dels principals nuclis de vida social a les ciutats eren els banys públics. Després es van considerar immorals, i el sabó va passar a ser una cosa que calia evitar. Es vestia la mateixa roba durant setmanes, i les pudors es tapaven amb perfums. No es va tornar a apreciar el sabó fins entrat el segle XVIII, quan els metges van adonar-se de la importència de la higiene per a la salut. A més, la industrialització i les importacions de greixos barats de les colònies van facilitar la fabricació de sabons a gran escala.

En la reacció de saponificació es forma el sabó a partir de triacilglicerol i NaOH o KOH. El sabó solubilitza els greixos per les seves propietats amfipàtiques, té una part apolar o hidrofòbica que interactúa amb els greixos i una part polar o hidrofílica que interactúa amb l'aigua. En els detergents actuals, part del sabó es substituït pels tensioactius (iònics o no iònics), productes químics que tenen també característiques amfipàtiques que emulsionen i solubilitzen els greixos.
Altres components dels detergents són: aigua, agents quelants que segresten els ions metàlics, abrillantadors òptics, lleixius i agents blanquejants, perfums i enzims.

Un detergent és una substància que neteja gràcies a tenir aquestes dues propietats:
  • Redueix la tensió superficial de l'aigua de manera que les molècules d'aigua no se senten tan atretes mútuament, i poden penetrar més bé en la superfície que s'ha de netejar. Segons la legislació vigent, un detergent és biodegradable si el tensioactiu deixa de tenir un 90% de la propietat tensioactiva 28 dies després de ser abocat a l'aigua.
  • El sabó i els tensoactious tenen un part hidrofóbica que es combina bé amb els greixos i una part hidrofílica que es combina bé amb l'aigua i que ajuda a solubilitzar les taques.

Encara que al 1913 Otto Röhm va patentar l’aplicació d’enzims pancreàtics en els detergents, la seva utilització no va començar fins els anys 60 quan es van introduir proteases estables en medi bàsic. Des de llavors la utilització dels enzims en els detergents a Europa a anat creixent. Als Estats Units es van deixar d’utilitzar els enzims en els detergents en els anys 70 degut a problemes al·lèrgics que van aparèixer sobretot en alguns treballadors de les empreses fabricants dels detergents. Els problemes al·lèrgics s’han minimitzat utilitzant preparacions que no produeixen pols, recobrint els enzims d’un material inert, desenvolupant els detergents líquids i en l’actualitat fins i tot dissenyant enzims menys al·lergènics. A diferència d'altres aplicacions industrials dels enzims, en els detergents els enzims no són utilitzats per a obtenir el producte final, formen part del producte final. En general, corresponen només a un 0,5-1% del producte final. Els avantatges d'utilitzar enzims en els detergents són:
  • Permeten obtenir un rentat més efectiu.
  • Permeten cicles de rentat a T més baixes. Això comporta un estalvi energètic.
  • Permeten reduir la quantitat d’aigua que es gasta.
  • Tenen un impacte mediambiental molt petit perquè són biodegradables.
  • Tenen un efecte positiu (en concret les cel·lulases) en la roba de cotó
L'objectiu dels enzims no és degradar un compost fins al final, només cal que ajudin a solubilitzar les taques.

Els principals enzims utilitzats en els detergents són:
  • proteases, per eliminar taques de proteïnes
  • lipases, per ajudar a trencar els greixos. Al 1988 es va utilitzar per primera vegada una lipasa en un detergent. La dificultat era que no existien lipases que fossin estables i actives en presència dels agents quelants i oxidants. Fins que no es van obtenir per enginyeria genètica, lipases més estables i sense requeriments de cations no es van poder utilitzar en els detergents.
  • amilases, per eliminar el midó -aquests enzims són importants en els detergents dels rentaplats, per eliminar els restes de midó del menjar
  • cel·lulases, que formen part dels detergents per la roba de color i actuen sobre les fibres de cotó (cel·lulosa), trencant les fibres trencades i gastades o eliminant les fibres dipositades. L'efecte macroscòpic de l'acció de les cel·lulases és una major brillantor dels colors i una major suavitat

El principal condicionant de l'ús dels enzims en els detergents és la seva estabilitat. Els enzims han de ser estables en les condicions de rentat - T entre 30-60 graus, pH bàsic entre 8-10 - i en presència d'agents quelants, agents oxidants i lleixiu. Per això les proteases que s'utilitzen són serin-proteases (no tiol proteases que s'oxiden més fàcilment o metaloproteases que requereixen ions metàlics). En els detergents granulats (en pols) l'estabilitat dels enzims és major perquè hi ha un baix contingut en aigua i perquè podem separar físicament els enzims de la resta de components. Una altra dificultat en la utilització d'enzims en els detergents és la seva proteòlisi. Un dels enzims presents en els detergents són les proteases. Aquestes proteases poden degradar-se elles mateixes, o degradar els altres enzims presents en els detergents. Per evitar la proteòlisi dels enzims durant l'emmagatzematge cal reduir el contingut d'aigua dels detergents líquids. Per aquest motiu s'afegeixen alcohols. L'estabilitat d'un enzim unit al seu substrat pot ser major que la de l'enzim lliure. Això també passa en els enzims del detergents. L'enginyeria de proteïnes juga un paper cada cop més important en el disseny de nous enzims més estables per als detergents.
Per acabar us deixo un vídeo d'un minut i mig sobre els avantatges d'utilitzar els enzims en els detergents i poder rentar a temperatures més baixes:

Fons d'informació consultades:
  • Els Detergents. Revista Opcions Març/Abril 2002. Edita: Centre de Recerca i Informació en Consum
  • Novozymes. Detergents

dimarts, 27 d’octubre del 2009

Enzims utilitzats en la indústria tèxtil

Des de fa molts anys els enzims s'utilitzen en la indústria de l'adob de les pells i més recentment s'utilitzen en la indústria tèxtil.

Adobar les pells significa: donar a les pells o els cuirs el tractament o els tractaments adequats per tal de transformar-los en una matèria que, a més de no ésser putrescible, posseeixi les propietats i l'aspecte necessaris per a l'aplicació pràctica a què vagin destinats. També es pot definir com: Estabilitzar el teixit col·lagènic de la pell per tal de fer-lo imputrescible i menys hidrolitzable.

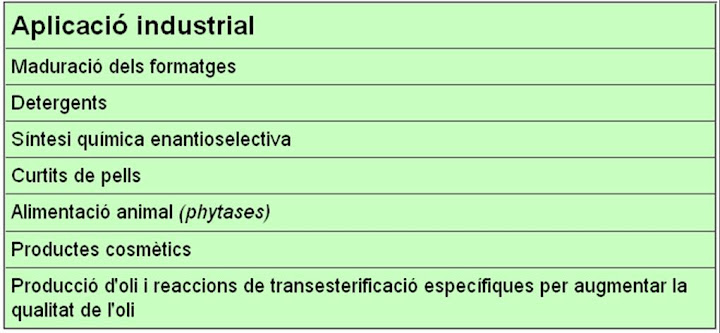
L'adobat de les pells és un procés químic i enzimàtic que consisteix en reforçar l'estructura proteica del col·lagen de la capa de la dermis, eliminant els altres compostos presents, com pèls, lípids i proteïnes solubles. El sistema més antic per adobar el cuir o les pells consisteix en utilitzar extractes vegetals rics en tanins. Aquest procés però pot tardar diverses setmanes o mesos. Al segle XIX es va introduir l'adobat químic que utilitza sulfat de crom. Abans, però, d'aquest procés calen altres passos (curing, soaking i dehairing) on s'utilitzen diversos enzims. Els principals enzims utilitzats són les proteases que ens ajudaran a degradar els pèls de la pell i altres proteïnes dels animals i les lipases per treure el greix. S'aconsegueix així augmentar la qualitat del producte final i reduir l'impacte mediambiental del procés:


Les fibres tèxtils abans de teixir-les han de ser reforçades per a què no es trenquin. Per això s'afegeixen compostos que s'adhereixin a les fibres. El midó, combinat amb petites quantitats d'altres substàncies com gelatina i carboximetilcel·lulosa (cel·lulosa tractada per fer-la soluble en aigua), és un dels compostos més utilitzats.
Després de teixir cal treure aquest midó i en aquest procés anomenat desizing és on ara s'utilitzen les alfa-amilases (els preparats que es venen per fer aquest procés, a part d'activitat amilasa, també tenen activitats proteasa i cel·lulasa). Abans s'utilitzaven tractaments amb àcids o bases que a part dels efectes negatius dels residus que s'originaven sobre el medi ambient, eren tractaments més agressius amb les fibres dels teixits.

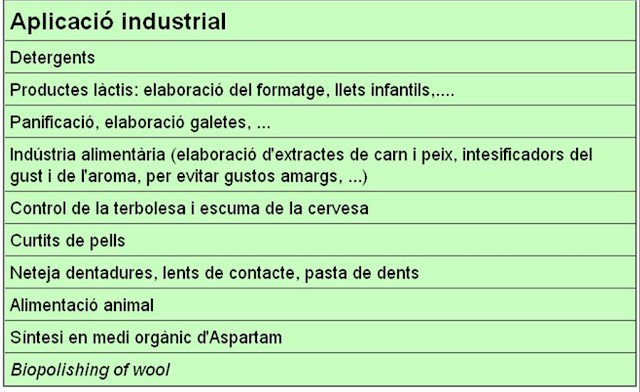
En la indústria tèxtil moderna s'utilitzen cada cop més els enzims en l'acabament dels productes. El principal component del cotó és la cel·lulosa que es troba organitzada en fibres. Mentre que moltes de les fibres són allargades i rectes, algunes petites fibres poden formar estructures protuberants. La correcta aplicació de cel·lulases pot treure aquestes protuberàncies donant lloc a productes més suaus i amb un color més intens. Aquests tècnica anomenada Biopolishing és el mateix principi bàsic d'acció de les cel·lulases dels detergents. En la llana, aquest procés s'anomena Biopolishing de la llana (Biopolishing of wool) i s'utilitzen proteases.

En l'acabat dels pantalons texans s'utilitzen també cel·lulases. Tradicionalment els texans anomenats Stonewashed jeans eren rentats amb pedra pòmez per destenyir-los i aconseguir el color desitjat . Des del 1992 s'ha estès l'ús de les cel·lulases per fer aquest procés, ara anomenat Biostoning. Les cel·lulases trenquen les fibres de cel·lulosa descolorint els pantalons. Si controlem l'acció d'aquestes cel·lulases aconseguirem no trencar els texans i aconseguir el color desitjat. Els avantatges d'aquest procés respecte al mètode tradicional són que els texans duren més perquè el tractament és menys agressiu i que s'utilitza una quantitat molt inferior d'aigua. Les cel·lulases que s'utilitzen solen ser cel·lulases àcides (amb un pH òptim d'activitat al voltant de 4.5) i cel·lulases neutre (amb un pH òptim d'activitat de 7.0). Aquesta aplicació s'ha convertit en un dels mercats de ventes més grans per a les cel·lulases.

Altres enzims utilitzats en la indústria tèxtil són: pectinases (per eliminar les pectines en el procés de Bioscouring), catalasa, peroxidasa i lacasa en els processos de blanquejar i tenyir.


dimarts, 13 d’octubre del 2009

Les glicosil hidrolases, proteases i lipases


Els enzims més utilitzats en la indústria són, en general, hidrolases. Entre elles destaquen les glicosil hidrolases (3.2.1.x), proteases (3.4.x.x) i lipases (3.1.x.x, son de fet esterases).

LES GLICOSIL HIDROLASES:

Les glicosil hidrolases són els enzims encarregats de trencar els enllaços glucosídics entre els monòmers dels oligo i polisacàrids o de trencar l'enllaç glucosídic entre un monòmer i una part no glucosídica. En general, els polisacàrids amb enllaços beta (cel·lulosa, xilà, ...) tenen funcions estructurals i els que tenen enllaços alfa (midó, glicogen, ...) tenen funcions energètiques o de reserva. La lactosa (disacàrid format per una molècula de galactosa i una de glucosa mitjançant un enllaç beta-1,4) és l'excepció. Principals glicosil hidrolases:
  • Les alfa-amilases (3.2.1.1), beta-amilases (3.2.1.2) i glucoamilases o amiloglucosidases (3.2.1.3) trenquen els enllaços alfa-1,4 del midó i glicogen (polímers de alfa-glucosa amb unions alfa-1,4 i alfa-1,6). Les alfa-amilases trenquen els enllaços alfa-1,4 interns, a l'atzar; les beta-amilases alliberen maltosa (dímer de dues glucoses unides per un enllaç alfa-1,4) i les amiloglucosidases trenquen els enllaços terminals i alliberen glucosa. Els enllaços alfa-1,6 del midó i glicogen són trencats per l'amilo-alfa(1-6)-glucosidasa i amiloglucosidasa (que tambe presenta una certa activitat per hidrolitzar aquests tipus d'enllaços).
  • Les cel·lulases (3.2.1.4 endoglucanases i 3.2.1.91 exoglucanases) i xilanases (3.2.1.8) trenquen els enllaços beta dels polisacàrids cel·lulosa i xilà. Les beta-glucosidases (3.2.1.21) trenquen l'enllaç beta de la cel·lobiosa (disacàrid de glucosa beta-1,4). Per determinar l'activitat enzimàtica de les cel·lulases cal utilitzar substrats solubles com per exemple la carboxi-metil-cel·lulosa.
  • Les beta-galactosidases (3.2.1.23) hidrolitzen la lactosa.
Moltes de les glicosil hidrolases poden tenir més d'una activitat. Moltes també tenen una estructura modular amb diferents dominis. Entre ells destaquen el domini catalític, un domini enllaçant i un domini d'unió a la cel·lulosa o cel·lulosa binding domain (CBD). Moltes glicosil hidrolases actuen de forma sinergètica (el tot és més que la suma de les parts). El cellulosoma està format per una proteïna amb un domini d'unió a la cel·lulosa a la qual s'uneixen diferents enzims amb diferents activitats catalítiques.

El mecanisme de reacció de les glicosil hidrolases és una catàlisi àcida on intervenen dos aminoàcids àcids (glutàmic o aspàrtic), un que actua com a donador de protons i l'altre com a nucleòfil o base (acceptor de protons). En el mecanisme retaining es donen dos atacs nucleòfils, es reté la configuració del carboni anomèric, es forma un intermediari glicosil-enzim i els aminoàcids catalítics han d'estar a una distància de 5.5 A. En el mecanisme inverting no es forma cap intermediari, no es reté la configuració del carboni anomèric i els dos grups àcids estan separats entre 6.5 i 9.5 A, una distància més gran perquè hi ha d'haver lloc per a una molècula d'aigua.

Aplicacions industrials de les glicosil hidrolases:


LES PROTEASES:

Les proteases (3.4.x.x) trenquen l'enllaç peptídic de les proteïnes. Moltes són específiques pel lloc on tallen. El reconeixement dels aminoàcids per on tallen es fa en funció de la seva càrrega i tamany. Les serin-proteases (p.ex. tripsina, elastasa, quimotripsina) tenen tres aminoàcids catalítics una Ser que actúa com a nucleòfil, una His que rep un protó de la Ser i un Asp que estabilitza la càrrega positiva de la His. El pKa del grup -OH de la serina (és a dir, el fet que perdi un protó) és molt diferent del d'una Ser lliure, degut a l'entorn on es troba (la presència d'una His que accepta aquest protó i un Asp que estabilitza la càrrega de la His). En el mecanisme de reacció de les serin-proteases es forma un intermediari acil-enzim i intervé una molècula d'aigua. El mecanisme de reacció de les tiol-proteases (p.ex. papaïna) és semblant a les serin-proteases però enlloc d'una serina trobem una Cys, i enlloc d'un Asp trobem un Trp. El pH òptim de la papaïna (entre 4-8) està comprés entre els valors dels pKas de la Cys i His catalítiques que són 4.2 i 8.2 respectivament. Degut a aquests valors dels pKs, en els valors òptims de pH la Cys es troba desprotonada i la His protonada. Aquests valors són molt diferents dels pKas de la Cys (8.3) i de la His lliure (6.0) i són deguts a l'entorn on es troben.

Aplicacions industrials de les proteases:


LES LIPASES:

Les lipases (3.1.x.x) són esterases que trenquen els enllaços éster dels lípids. Són enzims que han de catalitzar reaccions en una interfase lípid-aigua i per això no segueixen una cinètica típica de Michaelis-Menten. La velocitat de reacció depèn del grau d'emulsió. Habitualment s'extreuen d'animals o microorganismes. El fet que tinguin una elevada enantioselectivitat, siguin estables en medi orgànic i no necessitin cofactors fan que les lipases siguin molt utilitzades en reaccions de síntesi en medis no aquosos. En el mecanisme de reacció de les lipases també intervenen una Ser -fa un atac nucleòfil-, una His -que accepta els protons de la serina- i un Asp -que estabilitza la càrrega positiva de la His. La Ser es troba en la seqüència conservada Gly-X-Ser-X-Gly que forma un gir després d'una cadena beta. En general, els ions Ca2+ augmenten la seva activitat.

Aplicacions industrials de les lipases:


Utilització dels enzims en l'alimentació animal:

El principal component de l'alimentació animal són materials de plantes com cereals (moresc, ordi, cibada). Mentre que la majoria del midó present en aquests cereals és ràpidament utilitzat pels animals, hi ha una part dels components d'aquests cereals (anomenada factors anti-nutricionals ANF) que no pot ser utilitzada perquè a l'animal li manquen els enzims necessaris. L'addició d'enzims que l'animal no té pot ajudar a digerir aquests ANFs. Alguns dels enzims que s'afegeixen són xilanases, beta-glucanases i proteases.

Una altra aplicació dels enzims en l'alimentació animal és la utilització dels enzims anomenats phytases (E.C. 3.1.3.16 són doncs esterases). El fòsfor en els vegetals s'emmagatzema en forma d'àcid phytic que l'animal no pot utilitzar perquè li falten els enzims adients. Per aquest motiu als pinsos se'ls hi sol afegir fòsfor inorgànic (així la font de P no es una limitació pel creixement dels animals). L'addició de phytases allibera el fòsfor reduint la necessitat d'una suplementació de fòsfor en la dieta dels animals i reduint la quantitat de fosfats dels excrements animals.

dimarts, 6 d’octubre del 2009

Redisseny d'enzims

L'interès per obtenir enzims amb propietats noves per la seva utilització en la indústria ha potenciat el desenvolupament de l'enginyeria de proteïnes. Abans del desenvolupament del camp de l’Enginyeria genètica, només érem capaços de fer servir els enzims que s’extreien d’algun ésser viu. Ara, som capaços de produir grans quantitats d’enzims, fent per exemple que siguin produïts pels microorganismes. A més, ara disposem també d’un conjunt de tècniques per poder canviar les característiques dels enzims. Així, si per exemple no trobem l’enzim que reuneixi totes les característiques desitjades (de funcionalitat, estabilitat, eficiència, ....) per a poder aplicar-lo en un procés industrial, ens podem plantejar modificar un enzim ja existent per intentar aconseguir que tingui les característiques desitjades. Aquest àrea del coneixement que ens permet fer això la podem anomenar Enginyeria de proteïnes.

Algunes de les modificacions més usuals que podem fer als enzims són:
  • augmentar la seva estabilitat
  • canviar algunes de les seves propietats cinètiques (vmax, kcat, km, ...),
  • canviar els valors òptims d'activitat, estabilitat
  • canviar la seva especificitat

L'enginyeria de proteïnes sol seguir l'anomenat "cicle del disseny" on un dels passos més importants és l'enzim de partida que volem millorar. Per exemple, si necessitem un enzim termoestable, el podem aïllar d'un microorganisme termoestable. La majoria dels canvis en els enzims els introduïm a nivell de DNA

Existeixen tres estratègies principals en l'enginyeria de proteïnes:

  • Disseny racional - Mutagènesis dirigida: consisteix en introduir una mutació concreta, per exemple canviar l'aminoàcid Alanina-245 per una Histidina. La limitació d'aquesta tècnica és la nostra desconeixença de molts dels aspectes que regeixen el plegament de les proteïnes i la relació entre la seva estructura i funció. En general per aplicar aquesta tècnica hem de tenir molta informació (com estructura tridimensional, mecanisme d'acció, ...) sobre l'enzim a mutar. En la tècnica del reemplaçament per cassette necessitem com a mínim dos oligonucleòtids sintetitzats químicament que continguin la mutació o mutacions desitjades. La mutagènesis dirigida utilitza un oligonucleòtid sintetitzat químicament que conté la mutació que volem introduir. Cal partir d'un DNA monocatenari i l'eficiència de la mutagènesis és com a màxim del 50%. En l'actualitat el més habitual és fer la mutagènesis dirigida en una PCR. La comparació de les seqüències primàries d'un grup de proteïnes homòlogues permet identificar els aminoàcids més conservats. Aquests aminoàcids són uns bons candidats a ser aminoàcids importants en l'activitat o manteniment de l'estructura tridimensional. Mitjançant la mutagènesis dirigida també podem analitzar el paper d'un aminoàcid en l'activitat, mecanisme de reacció, manteniment de l'estructura, .... La mutagènesis dirigida amb oligonucleòtids degenerats permet obtenir diversos mutants diferents.

  • Evolució dirigida - Mutagènesis aleatòria. Consisteix en fer mutacions a l'atzar i després triar el mutant amb les característiques desitjades. En aquesta tècnica el procés de selecció és vital, i hi haurà el compromís entre introduir un gran nombre de mutacions per trobar el mutant que ens interessa, mantenint però l'activitat enzimàtica. La mutagènesis aleatòria la podem fer mitjançant els mètodes d'evolució dirigida o DNA Shuffling, on imitem el procés de l'evolució tot combinant la mutagènesi aleatòria, la recombinació i la selecció dels mutants desitjats. Anomenem Family Shuffling quan partim de més d'un gen homòleg (per exemple de 4 gens del mateix enzim de 4 espècies diferents) per obtenir els mutants. En la mutagènesi aleatòria no és tan important la informació (de l'estructura tridimensional, mecanisme de reacció, ...) que tinguem de l'enzim. Podem obtenir mutants sense saber l'estructura de l'enzim a mutar. En la mutagènesis aleatòria la selecció és molt important. El procés de selecció ha de ser específic (You get what you screen for), ràpid, senzill i és convenient que permeti l'expressió dels gens mutats. L'ideal seria una selecció positiva on només sobrevisquin els microorganismes que contenen el mutant que volem (complementació).

  • Disseny de novo. Consisteix en dissenyar una cadena polipeptídica que adopti una estructura i activitat determinades. Encara estem molt lluny d'aconseguir-ho. El que sí s'han fet és dissenyar petites cadenes polipeptídiques que tenen una estructura determinada molt senzilla.

L'estabilitat d'una proteïna està determinada per la diferència d'energia lliure entre l'estat natiu i el desnaturalitzat. Tots els canvis que provoquin un augment de la rigidesa de la proteïna (és a dir una disminució de les conformacions possibles en l'estat desnaturalitzat) en principi poden augmentar la seva estabilitat. Cal però tenir en compte si es manté també l'activitat. Alguns dels canvis per augmentar la termoestabilitat d'un enzim poden ser:
  • augmentar el nombre de ponts di-sofre (S-S)
  • substituir les glicines, l'aminoàcid amb més llibertat conformacional
  • estabilitzar els dipols de les hèlix alfa (aminoàcids àcids en l'extrem Nterminal i aminoàcids bàsics en l'extrem Cterminal)
  • augmentar les interaccions hidrofòbiques entre residus interns
  • augmentar el nombre de ponts salins
  • substituir les Gln i Asn per evitar la seva desaminació per efecte de la Temperatura
  • fer canvis a l'atzar

Els mutants múltiples ens permeten veure l'additivitat de les mutacions.